En
esta unidad numero 8 llamada “REGULACIÓN DE LA EXPRESION GENÉTICA aprendimos
que la regulación genética comprende todos aquellos procesos que
afectan la acción de un gen a nivel de traducción o
transcripción, regulando sus productos funcionales.Vimos que en eucariotas son
varios puntos en los que se puede controlar la expresión génica que
son: Control pretranscripcional, control transcripcional y control
postranscripcional. Durante la unidad aprendimos algunos términos nuevos,
tales como son el promotor que es una secuencia reconocida
específicamente por la RNA polimerasa para iniciar la transcripción de una
unidad de transcripción, otro es el operador que es una secuencia del promotor
que es reconocida por una proteína reguladora. Y aprendimos que un Operón es
grupo de genes estructurales cuya expresión está regulada por los mismos
elementos de control promotor y operador y genes reguladores.Otros puntos
importantes que estudiamos y conocimos fue el Operón de Lactosa que es
un operón requerido para el transporte y metabolismo de la
lactosa en la bacteria Escherichia coli, así como en algunas
otras bacterias entéricas que presenta genes estructurales, vimos que en
ausencia de lactosa no había transcripción, y en presencia de
lactosa y junto con el inductor provocaban la transcripción. El otro
operón que vimos fue el del Triptofano que es un sistema de tipo
represible, ya que el aminoácido triptófano que es correpresor, este impide la
expresión de los genes necesarios para su propia síntesis cuando hay niveles
elevados de triptófano, y cuando hay ausencia de triptofano es cuando
existe transcripción.sobre la regulación de la transcripción en organismos
eucarióticos vimos que existen varias señales que modifican
dicha transcripción, que son señales hormonales y señales nutricionales. Y
las proteínas que modulan en dicho proceso son los activadores
transcripcionales, coativadores, correpresores, y los transactivadores.En esta
unidad cumplió con el objetivo planteado, ya que a lo largo de
los temas vistos integramos los conocimientos anteriores
que teníamos como son traducción, transcripción con
los mecanismos de regulación genética, y así se entendio a nivel
molecular los procesos metabólicos.

LIC: BIOLOGÍA VI SEMESTRE "A" ASIGNATURA: BIOLOGÍA MOLECULAR
jueves, 24 de mayo de 2012

miércoles, 23 de mayo de 2012
TAREA DE LA UNIDAD NUMERO 7
Explique:
Es posible que la maquinaria Eucarionte de traducción (Ribosomas,
factores, enzimas, RNAt), puedan traducir el RNam de una bacteria?
8.3 REGULACIÓN DE LA TRANSCRIPCIÓN EN ORGANISMOS EUCARIÓTICOS.
Señales que codifican la Transcripción.
 **Señales hormonales: Que interaccionan con un receptor de la membrana. En la mayoría de los
casos, la señal externa provoca la aparición del segundo mensajero intracelular.
La cascada de transducción de señal subsiguiente produce un regulador de
transcripción específico.

 Y es correpresor si ayuda a inactivar el promotor. Los
correpresores pueden tener actividad desacetilasa, con lo que hace que el DNA
se una con más firmeza a los nucleosomas, inactivando el promotor porque no
puede ser reconocido por los factores generales de transcripción.
3.- Transactivadores

Potenciadores
Explique identificando los incovenientes que encontrarias..
Todos los organismos vivos necesitan sintetizar proteínas y todas las células de un organismo necesitan sintetizar proteínas por igual, por lo tanto, se dice que los ribosomas son un componente importante de todas las células de todos los organismos. En la constitución de los ribosomas, los rRNA y las proteínas asociadas son levemente diferentes entre los procariotas y los eucariotas, por lo que NO es posible que se pueda traducir RNAt de bacterias.
Porque los ribosomas y la estructura maquinaria en los Eucariotas y procariotas es diferente, y eso implica que se pueda copiar. En los eucariontes el ribosoma y sus subunidades son más grandes llegando a medir 80S y el de los procariotas llegando a medir 40 y 60S. Por lo tanto sería difícil la transcripción,en los eucariotas el ribosoma no tiene sitio E, por lo tanto no había la posibilidad de que el primer codón que es AUG se coloque en el sitio correcto. Lo que hace posible que el codón se coloque en dicho sitio, son las secuencias de Shine-Dalgarno y en las eucariotas no se encuentran. Los factores de traducción son diferentes, y también factores de iniciación.
Otro incoveniente y por que se presente es que el ARNm en eucariotas no es lineal y sufre diversos cambios desde el inicio del núcleo hasta llegar al citoplasma y los ribosomas tienen primero que eliminar dicho cambio para traducirlo, la traducción del ARNm en eucariotas mas sin embargo es circular uniéndose a la caperuza con la cola de poli A, el ARNm es monocistromico, es decir, que solo codifica una proteína, los procariotas son policistromicos, por que codifican varias proteínas.
Un inconveniente más y creo yo el mas importantes es que el ARNm de bacterias es de vida muy corta llegando a durar solo unos pocos minutos, y por lo tanto en eucariontes la longevidad de los ARNm es mucho más larga, llegando a durar de horas y días.
_______________________________________________________________________________
8.3 REGULACIÓN DE LA TRANSCRIPCIÓN EN ORGANISMOS EUCARIÓTICOS.
Señales que codifican la Transcripción.
Los tipos de señales que pueden
alterar la transcripción de un gen puede ser de varios tipos:
**Señales hormonales: Que interaccionan con un receptor de la membrana. En la mayoría de los
casos, la señal externa provoca la aparición del segundo mensajero intracelular.
La cascada de transducción de señal subsiguiente produce un regulador de
transcripción específico.
**Las señales nutricionales e iónicas:
Suelen darse en eucariotas unicelulares solamente porque son los únicos a los
que va a afectar el medio en el que están creciendo. La excepción se encuentra
en los hepatocitos (es el regulador de la concentración sanguínea de muchos
metabolitos) y las células en cultivo.
**Contactos
intercelulares: Especialmente durante el desarrollo embrionario. La
sinapsis también pertenece a este grupo.
En eucariotas, pueden actuar como
reguladores tanto moléculas de RNA como proteínas. Entre las proteínas, las hay
que forman parte de la holoenzima polimerasa que son los factores de
transcripción, otras intervienen en la remodelación de la cromatina y un tercer
grupo se une al DNA para regular la transcripción, que es el que nos ocupa.
1.- Activadores
transcripcionales
Los activadores son la proteínas
que se van a unir a los elementos distales que son “SDE y potenciadores” para
activar la transcripción. Son específicos
de unos pocos promotores por lo que no
estarán en todos los tipos celulares, reconocen entre 6 y 14 pb en el
promotor.

Suelen tener dos dominios
estructurales que su presencia las convierte en
proteínas modulares en las que el dominio de unión y el de activación pueden
funcionar independientemente
Ø Dominio
de unión a DNA: Que consta de 60 a 100
aminoácidos consecutivos.
Ø Dominio de activación de la transcripción: Que consta de 30 a 100 aminoácidos que no tienen por qué ser consecutivos.
Ø Dominio de activación de la transcripción: Que consta de 30 a 100 aminoácidos que no tienen por qué ser consecutivos.
2.-
Coactivadores y correpresores
La acción de
un activador de transcripción o de un represor puede ejercersedirectamente
sobre el complejo basal bien sobre la RNA-polimerasa, alguno de los TFII o los
TAFII, o a través de una molécula intermediaria que puede ser un coactivador o
un correpresor.
Se le llama
coactivador si ayuda a activar la transcripción. Un mismo coactivador puede
recibir señales de distintos activadores para transmitirlos hacia el complejo
del promotor basal.
3.- Transactivadores
Son aquellos que directamente
ejercen su acción interaccionando con el complejo de iniciación formado en el
promtor basal, bien sobre la propia polimerasa o, más normalmente, sobre una de
las TAF o de los TFII, para activar o reprimir la transcripción, puesto que no
son actividades exclulyentes.

3.- Transactivadores
La
fuente de regulación más potente es al de los elementos distales: Que son los
potenciadores. Su función es la de amplificar la transcripción del promtor
incluso más de 1000 veces. Los hay específicos del tejido que
sólo activan la transcripción de su gen en determinados tejidos, los hay específicos de la
etapa de desarrollo e inducibles por alguna señal
externa como hormonas, metales pesados, choque térmico, infección viral, etc.
Necesitan la mediación de un coactivador.
Potenciadores
La
fuente de regulación más potente es la de los elementos distales: Que son los
potenciadores. Su función es la de amplificar la transcripción del promtor
incluso más de 1000 veces. Los hay específicos del tejido
que sólo activan la transcripción de su gen en determinados tejidos, específicos de la etapa de desarrollo e
inducibles por alguna señal
externa como hormonas, metales pesados, choque térmico, infección viral, etc.
Necesitan la mediación de un coactivador.
 Silenciamiento de genes
La unión inespecífica de proteínas reguladoras es un problema importante en los organismos con genomas grandes. Para combatirla, los eucariotas han hecho que los genes tengan en torno a 5 dianas para proteínas reguladoras diferentes. Esta estrategia es útil para los activadores de la transcripción porque es una estrategia eficiente y ahorra esfuerzo. Una estrategia similar no es factible con los inhibidores de la transcripción, por lo que se da poca regulación por silenciamiento.

Inactivación mediante una proteína reguladora
Se consigue uniendo una proteína reguladora a cualquiera de los distintos elementos que forman los promotores.


La unión inespecífica de proteínas reguladoras es un problema importante en los organismos con genomas grandes. Para combatirla, los eucariotas han hecho que los genes tengan en torno a 5 dianas para proteínas reguladoras diferentes. Esta estrategia es útil para los activadores de la transcripción porque es una estrategia eficiente y ahorra esfuerzo. Una estrategia similar no es factible con los inhibidores de la transcripción, por lo que se da poca regulación por silenciamiento.
El silenciamiento de un gen puede ocurrir por diversas formas:
#-La inactivación por interacción con un regulador.
#-El silenciamiento génico postranscripcional.
#-La metilación del DNA en vertebrados directamente ligada al superenrollamiento y al silenciamiento.
Inactivación mediante una proteína reguladora
Se consigue uniendo una proteína reguladora a cualquiera de los distintos elementos que forman los promotores.
Los
que reconocen los
elementos distales:
•
El silenciador específico de tejido: Se encarga de silenciar en cualquier
célula los genes que son específicos de células hepáticas
• Las hormonas esteroideas
• El gen Pit-1
• Las hormonas esteroideas
• El gen Pit-1
Los
que reconocen los
elementos proximales:
• La proteína CDPC: Recibe el
nombre de desplazamiento de CAAT porque impide que la caja CAAT sea
reconocida por sus proteínas específicas.
Los que reconocen el promotor basal:
• El represor global Dr1/DRAP1: Es un heterodímero que se une a TBP para evitar que interactúe con TFIIB
PTGS: Silenciamiento génico postranscripcional
Este proceso consiste en la degradación específica de los mRNA complementarios de una de las hebras del dsRNA. Los mRNA degradados suelen ser transcritos aberrantes de diversos orígenes. También se denomina cosupresión o extinción.
Este RNA aberrante es sustrato de una RNA-polimerasa dirigida por RNA que genera una larga molécula de dsRNA, conocida con el nombre de dsRNA desencadenante. Éste es fragmentado por la ribonucleasa Dícer en una serie de dsRNA de 21 a 25 nucleótidos de longitud denominados RNA interferentes pequeños (siRNA). Este siRNA se asocia a una serie de proteínas para formar el complejo RISC. En este complejo, una de las hebras del siRNA sirve de guía para localizar cualquier mRNA complementario presente en la célula con vistas a su destrucción mediante una endorribonucleasa del complejo RISC.
Se trata de un mecanismo extremadamente conservado entre los organismos eucariotas como los protozoarios, mamíferos, plantas, peces, insectos, hongos, invertebrados y seres humanos por lo que puede tratarse de un mecanismo de regulación y defensa que tuvo su origen en el mundo RNA.
En algunos organismos (por ejemplo, en las células humanas) se manifiesta como un fenómeno transitorio (que cede con la desaparición del dsRNA exógeno desencadenante), en plantas y nematodos, se amplifica y difunde hacia el resto de las células del organismo, pudiendo llegar a ser heredable, al menos por algunas generaciones.

Desempeña un papel fundamental en varios procesos celulares:
ü Defensa contra la invasión de ácidos nucleicos intrusos (normalmente virus)
ü Integridad del genoma, y a que reprime la transposición de los elementos móviles
ü Destrucción de mRNA aberrantes que generarían desconcierto intracelular
ü Mantenimiento de las zonas superenrolladas (heterocromatina) del genoma.
Silenciamiento por metilación
No todos los organismos tienen el
DNA metilado. En los mamíferos, el DNA metilado forma heterocromatina a la que
no pueden acceder los factores de transcripción. Por tanto, los genes metilados
no se pueden transcribir ni tan siquiera residualmente. Se trata de un
mecanismo muy eficiente de silenciamiento génico que, además, disminuye la
cantidad de DNA que los factores de transcripción y la RNA-polimerasa tienen
que rastrear para buscar los promotores.
Algo menos del 5% de las citosinas
se encuentran metiladas en el genoma. De ellas, la más abundante es la 5-metil-citosina.
Esta metilación aparece casi exclusivamente sobre la secuencia CG en lo que se
denomina islotes CpG. Los islotes CpG son secuencias de aproximadamente
1 kpb cuya riqueza en el doblete CpG es mayor que en el resto del genoma. Los
genes se expresan muy intensamente cuando sus islotes CpG están poco metilados "hipometilados", mientras que no se expresan si están hipermetilados.
Es muy frecuente que a este tipo de
regulación se le denomine regulación epigenética.
Bibliografía:
*http://www.biologia.edu.ar/adn/adntema4.htm
martes, 22 de mayo de 2012
8.4.2 OPERÓN DE TRIPTOFANO.
El operón triptófano
es un sistema de tipo represible, ya que el aminoácido triptófano correpresor
impide la expresión de los genes necesarios para su propia síntesis cuando hay
niveles elevados de triptófano. Sin embargo, en ausencia de triptófano o a
niveles muy bajos se transcriben los genes del operón trp.


Los elementos del operón Triptofano son semejantes a los del operón lactosa:

Descripción de los elementos:
Ø Genes estructurales: Existen cinco genes estructurales.
Siguiendo
el orden trpE-trpD-trpC-trpB-trpA.
Ø Elementos de control: Promotor (P) y operador (O). El
promotor y el operador están al lado de los genes estructurales y en el
siguiente orden: P O trpE-trpD-trpC-trpB-trpA.
Las enzimas codificadas por estos cinco genes estructurales actúan en la ruta
metabólica de síntesis del triptófano en el mismo orden en el que se encuentran
los genes en el cromosoma.
Ø Gen regulador (trpR): Codifica para la proteína reguladora.
Este gen se encuentra en otra región del cromosoma bacteriano aunque no muy
lejos del operón.
Ø
Correpresor: Triptófano.
Los genes estructurales del operón triptófano se
encuentran en el mismo orden que actúan las productos codificados por ellos en
la ruta biosintética del triptófano.
Orden de los genes
estructurales del operón triptófano y ruta de síntesis del triptófano

Operón
triptófano: En ausencia de triptófano
En ausencia de triptófano, o cuando
hay muy poco, la proteína reguladora producto del gen “trpR” no es capaz de unirse al operador
de forma que la ARN-polimerasa puede unirse a la región promtora y se
transcriben los genes del operón triptófano.

Operón triptófano: En
presencia de triptófano
En
presencia de triptófano, el triptófano se une a la proteína reguladora o
represora cambiando su conformación, de manera que ahora si puede unirse a la
región operadora y como consecuencia la ARN-polimerasa no puede unirse a la
región promotora y no se transcriben los genes estructurales del operón trp.
Por tanto, la diferencia esencial
entre el operón lac (inducible) y el operón trp (represible), es que en este
último el represor del triptófano solamente es capaz de unirse al operador
cuando previamente está unido al trp.

Bibliografía:
http://www.ucm.es/info/genetica/grupod/Operon/Operon.htm
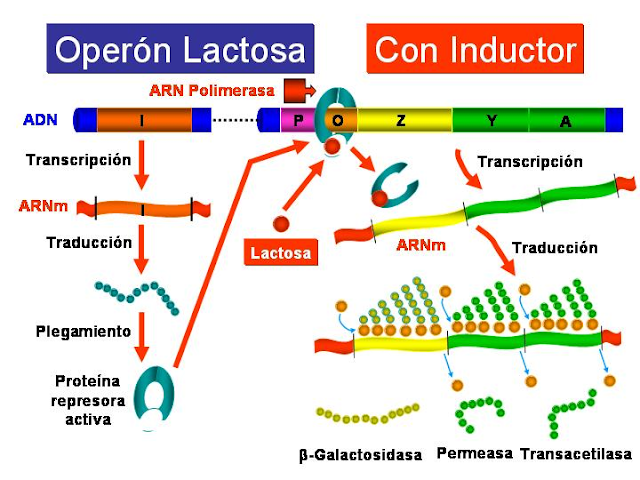
8.2.1 OPERON DE LACTOSA (CONTROL POSITIVO).
Los científicos Francois
Jacob,y Jacques Monod analizaron el sistema de la lactosa en E. coli, de manera que los resultados
de sus estudios permitieron establecer el modelo genético del Operón que permite comprender como
tiene lugar la regulación de la expresión génica en bacterias.
Bibliografia:
http://www.ucm.es/info/genetica/grupod/Operon/Operon.htm
Definiendo al
operadon como un grupo de genes estructurales
cuya expresión está regulada por los mismos elementos de control (promotor y
operador) y genes reguladores
Los principales elementos que constituyen un operón son los
siguientes:
 Descripción de los Elementos
 Descripción de los Elementos
Genes estructurales
|
Llevan
información para polipéptidos. Se trata de los genes cuya expresión está
regulada.
|
Promotor (P)
|
Se trata de un
elemento de control que es una región del ADN con una secuencia que es reconocida
por la ARN polimerasa para comenzar la transcripción. Se encuentra
inmediatamente antes de los genes estructurales
|
Operador (O)
|
Trata de otro
elemento de control que es una región del ADN con una secuencia que es
reconocida por la proteína reguladora. Se sitúa entre la región promotora y
los genes estructurales.
|
Gen regulador (i)
|
Secuencia de ADN
que codifica para la proteína reguladora que reconoce la secuencia de la
región del operador. El gen regulador está cerca de los genes estructurales
del operón
|
Proteína Reguladora
|
Proteína
codificada por el gen regulador. Está proteína se une a la región del
operador.
|
Inductor
|
Sustrato o
compuesto cuya presencia induce la expresión de los genes.
|
El
Operon Lactosa
Es un operón requerido para el transporte y metabolismo de
la lactosa en la bacteria Escherichia coli, así como en algunas otras bacterias
entéricas. Presenta tres genes estructurales adyacentes, un promotor,
un terminador y un operador.
Elementos del
operón lactosa
|
v El gen z+:
Codifica
para la -galactosidasa que cataliza la hidrolisis de la lactosa en
glucosa más galactosa.
v El gen y+:
Codifica
para la galactósido permeasa que transporta-galactósidos al
interior de la célula bacteriana.
v El gen a+:
Codifica para la tiogalactósido
transacetilasa que cataliza la transferencia del grupo acetil del
acetil Coenzima A al 6-OH de un aceptor tiogalatósido. Este gen no está
relacionado con el metabolismo de la lactosa.
Operón lactosa en ausencia de lactosa

Operón Lactosa en presencia de Lactosa
|
En
presencia del inductor la lactosa, se une a la proteína reguladora que cambia
su conformación y se suelta de la región operadora dejando acceso libre a la
ARN-polimerasa para que se una a la región promotora y se transcriban los genes
estructurales. Por consiguiente, la presencia del inductor hace que se expresen
los genes estructurales del operón, necesarios para metabolizar la lactosa.
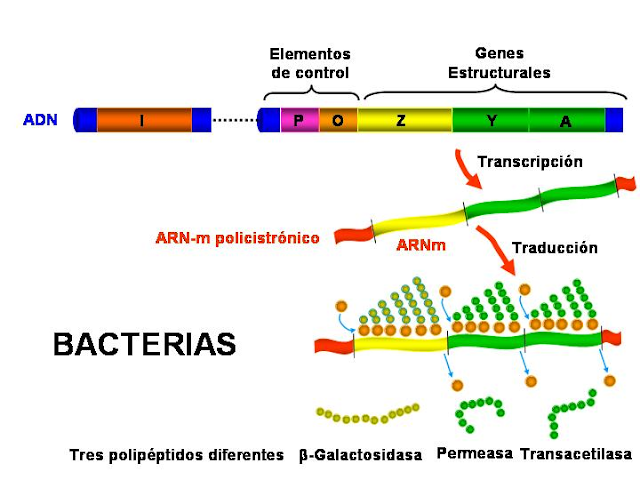
Es conveniente recordar que los tres genes estructurales del operón lactosa se
transcriben juntos en un mismo ARNm, es decir que los ARN mensajeros de
bacterias suelen ser policistrónicos, poligénicos o multigénicos. Sin embargo,
en eucariontes los mensajreos suelen sen monocistrónicos o monogénicos, es
decir, corresponden a la transcripción de un solo gen estructural.

Operón lactosa: ARNm multigénico o policistrónico

Bibliografia:
http://www.ucm.es/info/genetica/grupod/Operon/Operon.htm
8.2 REGULACIÓN DE LA TRANSCRIPCIÓN EN ORGANISMOS PROCARIÓTICOS.
Términos:

|
Unidad de
Transcripción
|
Los
genes/cistrones/ORF que se transcriben bajo en control de un mismo promotor
|
|
Promotor
|
Secuencia
reconocida específicamente por la RNA polimerasa para iniciar la
transcripción de una unidad de transcripción
|
|
Cistrón
|
Cada
una de las partes de un transcrito que darán una biomolécula funcional
(proteína o RNA).
|
|
Terminador
|
Conjunto
de secuencias que marcan el fin de la transcripción de una unidad de
transcripción.
|
|
Operón
|
La
unidad de transcripción (promotor, cistrones y terminador) junto con las
secuencias/genes adicinales que sirven para regularlo
|
|
Polaridad
|
Es
el efecto de una mutación en un gen sobre la expresión de otros cistrones
distales dentro del mismo operón
|
|
Proteína
Reguladora
|
Aquella
que controlará la expresión de un operón. Pueden ser activadoras o represoras
|
|
Operador
|
Secuencia
del promotor que es reconocida por una proteína reguladora.
|
|
Efector
|
Biomolécula
no proteica que controla la activación o inactivación de la proteína reguladora.
Las hay inhibidoras y corepresoras.
|
|
Regulón
|
Conjunto
de genes/operones que responden al unísono por la acción de un regulador
|
Cambios
en la estructura del DNA
Metilación
La metilación provoca un
cambio de estructura en el apareamiento entre las bases nitrogenadas que puede
alterar su reconocimiento por algunas proteínas. El más conocido es el de la
metilasa dam que reconoce la secuencia GATC y metila la A.
La mayor parte de los genes
cuya exprexión se ve reprimida por la metilación son genes cuya expresión sólo
se necesita durante la replicación (único momento en el que una cadena del DNA
está transitoriamente hemimetilado), permaneciendo reprimidos el resto del
ciclo celular.
Superenrollamiento
Para mantener una situación
homeostática en la célula en relación al número de superenrollamientos es
necesario mantener con una regulación contraria los genes “topa” que codifica
la topoisomerasa I y “gyrA” y “gyrB” que determinan las dos subunidades de la
DNA-topoisomerasa II. No se conoce el mecanismo molecular que controla esta
regulación. Sí se sabe que mutantes en las topoisomerasas disminuyen la tasa
general de transcripción.
Cambios
en la interacción entre el DNA y la RNA-polimerasa
Lo provocan aquellos cambios
que, sin alterar ni la estructura del DNA ni la de la RNA-polimerasa, sí que
afectan la interacción entre ambas. Es necesaria la comparecencia de una
tercera molécula, habitualmente una proteína aunque a veces puede ser RNA.

Son tres mecanismos los que pueden
alterar esta interacción:
Ø Modificación
de la interacción entre RNA polimerasa y el promotor debido a la existencia de
una proteína reguladora y un efector.
Ø Secuencias
reguladoras a distancia
Ø Modificación
de la terminación: Antiterminación
Bibliografía:
http://biomoleculi.galeon.com/tres.htm
8.1 NIVELES DE REGULACIÓN DE LA EXPRESIÓN GENÉTICA.

La estrategia procariota pretende
alcanzar las máximas tasas de proliferación cuando el entorno se lo permita.
En cambio, la estrategia eucariota ha
de ser distinta puesto que en los organismos pluricelulares donde el medio
intercelular es relativamente constante, el control génico está al servicio de
la especialización celular.
Así, se encuentran genes que no
responden a cambios fisiológicos y otros que sufren un fuerte control como
consecuencia del desarrollo, de la organización de células en tejidos, y de los
tejidos en organismos completos.
La genómica
indica:
- El número de genes no varía mucho entre las
especies: los vertebrados tienen como mucho el doble de genes que
los invertebrados;
- El número de
genes no sirve para explicar la diversidad evolutiva por mutación o
duplicación génica;
- La variabilidad
de los genes se debe a la duplicación de genes en vez de la creación de
genes nuevos.
- La complejidad
evolutiva se correlaciona con el aumento de genes reguladores: en las
levaduras hay un gen regulador por cada 20 funcionales, pero en humanos
hay más de 3 000 reguladores para unos 30 000 genes
Es por esto que la complejidad de los organismos emerge de una regulación de la expresión
génica cada vez más elaborada y no de cambios o mutaciones en los genes
estructurales o enzimáticos: la secuencia de las proteínas se conserva mucho a
través de distintas especies, sin cambios importantes mientras que los cambios
en el orden de los elementos del promotor o de sus elementos reguladores
provocan alteraciones drásticas.
Son varios los puntos en los
que se puede controlar la expresión génica de eucariotas:
|
Control pretranscripcional:
|
Determina
la accesibilidad de la comatina a la maquinaria de transcripción. Lo afectan
el superenrollamiento y la metilación. También se conoce como regulación epigenética ya que no
depende de la secuencia sino de la conformación del DNA.
|
|
Control
transcripcional:
|
Determina la frecuencia y/o velocidad
de inicio de transcripción mediante la accesibilidad de los sitios de inicio,
la disponibilidad de los factores de transcripción y la eficacia de los
promotores. La elongación a penas se ve afectada más que por la acción de
algunos oncogenes que la hacen abortar prematuramente.
|
|
Control postranscripcional:
Puede
ser de varios tipos;
|
Es
el que se ejerce una vez que el transcrito ha terminado de sintetizarse.
|
|
Control de la Maduración
|
|
|
Control del transporte
|
|
|
Control de la
estabilidad
|
Bibliografía:
http://med.unne.edu.ar/catedras/bioquimica/expresion.htm
lunes, 21 de mayo de 2012
INTRODUCCIÓN
En esta unidad numero 8
llamada “REGULACIÓN DE LA EXPRESION GENÉTICA “aprenderemos que la regulación
genética comprende todos aquellos procesos que afectan la acción de
un gen a nivel de traducción o transcripción, regulando sus
productos funcionales.
Así como también conoceremos
que existen niveles de regulación de la expresión genética. Veremos la
regulación de transcripción en organismos procarióticos tanto en organismos
eucarióticos. Otros puntos importantes que estudiaremos también es el Operón de
Lactosa es un operón requerido para el transporte
y metabolismo de la lactosa en la bacteria Escherichia coli, así
como en algunas otras bacterias entéricas que presenta tres genes
estructurales adyacentes, un promotor, un terminador y
un operador lo estudiaremos en su control positivo y negativo.
Otro operón es el Operón de Triptofano que es un sistema de tipo represible, ya
que el aminoácido triptófano que es correpresor impide la expresión de los
genes necesarios para su propia síntesis cuando hay niveles elevados de
triptófano lo estudiaremos en su control negativo y positivo también.
OBJETIVO
ü Integrar los conocimientos anteriores con los mecanismos de regulación genética
para entender a nivel molecular los
procesos metabólicos.
METODOLOGÍA
La metodología que utilizare en mi portafolio de
evidencias de trabajo, así como mis tareas, resumen de las clases, e
investigaciones. Serán conforme a los días de clases.
Por ejemplo un día
Martes en la clase, el profesor nos habla de los Niveles de regulación de la expresión genética, ese mismo día visto el tema, por la
tarde subiré información sobre el tema mencionado.
Cuando el profesor, programe una fecha para entregar un trabajo
de investigación, y se llegue el día de entrega, subiré mi
trabajo realizado.
Cuando el profesor, nos deje algún ejercicio en clase,
tomare evidencias "Fotografías" Para tenerlas vista en mi portafolio
de evidencias, y así mismo comprobar mis trabajos. De igual
manera serán los exámenes aplicados.
Ahora bien, la metodología que utilizare para poder
aprobar la 8 unidad con una buena nota serán; Primeramente, asistir a todas las
clase, llegando puntual, prestar atención a los temas, cualquier duda o
pregunta que tenga, preguntársela al profesor. Cuando deje un trabajo
de investigación, revisaré diferentes bibliografías actuales para
presentar un buen trabajo. También si es
necesario discutiré la información encontrada con mis compañeros de
clase, o con el profesor. Realizare esquemas o cuadros sinópticos para poder
entender a manera de dibujos los conocimientos adquiridos.
EVIDENCIAS


Examen de la unidad número 7 “Transcripción
Genética”
Suscribirse a:
Entradas (Atom)